Zigotas ir pirmās jauno organismu šūnas. Zigotas attīstības stadijas
EMBRIJU ATTĪSTĪBA
Sasmalcināšanas stadijas būtība. Sadalīšana -šī ir virkne secīgu zigotas un turpmāku blastomēru mitotisku dalījumu, kas beidzas ar daudzšūnu embrija veidošanos - blastula. Sasmalcināšanas pirmais dalījums sākas pēc priekškodolu iedzimtā materiāla apvienošanas un kopīgas metafāzes plāksnes veidošanās. Šūnas, kas veidojas šķelšanās laikā, sauc blastomēri(no grieķu val. sprādziens- asns, dīglis). Sasmalcināšanas mitotisko dalījumu iezīme ir tāda, ka ar katru dalīšanos šūnas kļūst arvien mazākas, līdz tās sasniedz somatiskajām šūnām ierasto kodola un citoplazmas tilpumu attiecību. Piemēram, jūras ezim ir nepieciešamas sešas nodaļas, un embrijs sastāv no 64 šūnām. Starp secīgām dalīšanām šūnu augšana nenotiek, bet DNS obligāti tiek sintezēta.
Ooģenēzes laikā tiek uzkrāti visi DNS prekursori un nepieciešamie fermenti. Rezultātā mitotiskie cikli tiek saīsināti un dalīšanās viens otram seko daudz ātrāk nekā parastajās somatiskajās šūnās. Pirmkārt, blastomēri atrodas blakus viens otram, veidojot šūnu kopu, ko sauc morula. Tad starp šūnām veidojas dobums - blastocoel, piepildīta ar šķidrumu. Šūnas tiek izstumtas uz perifēriju, veidojot blastulas sienu - blastoderma. Kopējais embrija izmērs šķelšanās beigās blastulas stadijā nepārsniedz zigotas izmēru.
Sasmalcināšanas perioda galvenais rezultāts ir zigotas pārvēršanās par daudzšūnu vienas maiņas embrijs.
Sasmalcināšanas morfoloģija. Parasti blastomēri ir sakārtoti stingrā secībā attiecībā pret otru un olas polāro asi. Sasmalcināšanas secība vai metode ir atkarīga no dzeltenuma daudzuma, blīvuma un olu sadalījuma veida. Saskaņā ar Sachs - Hertwig noteikumiem, šūnas kodols mēdz atrasties citoplazmas centrā bez dzeltenuma, bet šūnu dalīšanās vārpstas - virzienā uz šīs zonas lielāko apjomu.
Oligo- un mezolecitālajās olās šķelšanās pilnīgs, vai holoblastisks.Šāda veida drupināšana ir sastopama nēģiem, dažām zivīm, visiem abiniekiem, kā arī marsupialiem un placentas zīdītājiem. Pilnībā sasmalcinot, pirmā dalījuma plakne atbilst divpusējās simetrijas plaknei. Otrā dalījuma plakne ir perpendikulāra pirmā dalījuma plaknei. Abas pirmo divu nodaļu vagas ir meridiāni, ᴛ.ᴇ. sākas no dzīvnieku pola un izplatās uz veģetatīvo polu. Olšūna ir sadalīta četros vairāk vai mazāk vienāda izmēra blastomēros. Trešā dalījuma plakne ir perpendikulāra pirmajiem diviem platuma virzienā. Pēc tam mezolecitālajās olās astoņu blastomēru stadijā izpaužas nevienmērīga drupināšana. Pie dzīvnieku staba ir četri mazāki blastomēri - mikrometri, uz veģetatīvās - četras lielākas - makromēri. Tad sadalīšana atkal notiek meridiānu plaknēs un pēc tam atkal platuma.
Kaulu zivju, rāpuļu, putnu un arī monotrēmu zīdītāju polilecitālajos oocītos notiek šķelšanās daļēja, vai meroblastisks,ᴛ.ᴇ. aptver tikai citoplazmu, kurā nav dzeltenuma. Tas atrodas tieva diska veidā pie dzīvnieku staba, saistībā ar to šāda veida drupināšanu sauc diskveida.
Raksturojot smalcināšanas veidu, tiek ņemts vērā arī blastomēru relatīvais novietojums un dalīšanās ātrums. Ja blastomēri ir izvietoti rindās viena virs otras pa rādiusiem, tiek saukta drupināšana. radiāls. Tas ir raksturīgs hordatiem un adatādaiņiem. Dabā ir arī citi blastomēru telpiskā izvietojuma varianti sasmalcināšanas laikā, kas nosaka tādus tā veidus kā spirāle gliemjiem, divpusējā ascaris, anarhiska medūzām.
Tika konstatēta saistība starp dzeltenuma sadalījumu un sinhronisma pakāpi dzīvnieku un veģetatīvo blastomēru sadalījumā. Adatādaiņu oligolecitālajās olās šķelšanās notiek gandrīz sinhroni, mezocitālajās olšūnās sinhronija tiek traucēta pēc trešās dalīšanās, jo veģetatīvie blastomēri lielā dzeltenuma daudzuma dēļ sadalās lēnāk. Formās ar daļēju sasmalcināšanu dalīšanās jau no paša sākuma ir asinhrona un blastomēri, kas ieņem centrālo pozīciju, sadalās ātrāk.
Rīsi. 7.2. Šķelšanās hordatos ar dažāda veida olām.
BET - lancete; B - varde; IN - putns; G - zīdītājs:
es- divi blastomēri II-četri blastomēri, III- astoņi blastomēri, IV- morula, V- blastula;
1 - vagu drupināšana, 2 -blastomēri, 3- blastoderma, 4- blastoiel, 5- epiblasts, 6- hipoblasts, 7-embrioblasts, 8- trofoblasts; attēlā redzamie kodolu izmēri neatspoguļo patiesās izmēru attiecības
Rīsi. 7.2. Turpinājums
Sasmalcināšanas beigās veidojas blastula. Blastulas veids ir atkarīgs no sasmalcināšanas veida un līdz ar to arī no olas veida. Daži drupināšanas un blastula veidi ir parādīti attēlā. 7.2. un shēmu 7.1. Sīkāku aprakstu par šķelšanos zīdītājiem un cilvēkiem skatiet sadaļā Sec. 7.6.1.
Molekulāri ģenētisko un bioķīmisko procesu iezīmes sasmalcināšanas laikā. Kā minēts iepriekš, mitotiskie cikli šķelšanās periodā ir ievērojami saīsināti, īpaši pašā sākumā.
Piemēram, viss skaldīšanas cikls jūras ežu olās ilgst 30-40 minūtes, bet S-fāzes ilgums ir tikai 15 minūtes. gi- un 02-periodi praktiski nav, jo olšūnas citoplazmā ir izveidots nepieciešamais visu vielu krājums, un jo lielāks, jo lielāks tas ir. Pirms katras dalīšanas notiek DNS un histonu sintēze.
Ātrums, ar kādu replikācijas dakša šķelšanās laikā pārvietojas gar DNS, ir normāls. Tajā pašā laikā blastomēru DNS ir vairāk iniciācijas punktu nekā somatiskajās šūnās. DNS sintēze notiek visos replikonos vienlaicīgi, sinhroni. Šī iemesla dēļ DNS replikācijas laiks kodolā sakrīt ar viena, turklāt saīsināta, replikona dubultošanās laiku. Tika parādīts, ka tad, kad no zigotas tiek izņemts kodols, notiek šķelšanās un embrijs savā attīstībā sasniedz gandrīz blastulas stadiju. Tālākā attīstība apstājas.
Šķelšanās sākumā cita veida kodolaktivitātes, piemēram, transkripcijas, praktiski nav. Dažādu veidu olās gēnu transkripcija un RNS sintēze sākas dažādos posmos. Gadījumos, kad citoplazmā ir daudz dažādu vielu, kā, piemēram, abiniekiem, transkripcija neaktivizējas uzreiz. RNS sintēze tajos sākas agrīnās blastulas stadijā. Gluži pretēji, zīdītājiem RNS sintēze sākas jau divu blastomēru stadijā.
Šķelšanās periodā veidojas RNS un proteīni, līdzīgi tiem, kas sintezējas oogenēzes laikā. Tie galvenokārt ir histoni, šūnu membrānas proteīni un fermenti, kas nepieciešami šūnu dalīšanai. Šīs olbaltumvielas tiek izmantotas nekavējoties kopā ar proteīniem, kas iepriekš tika uzglabāti olšūnu citoplazmā. Līdz ar to sasmalcināšanas periodā ir iespējama olbaltumvielu sintēze, kas iepriekš nebija. To apstiprina dati par reģionālām atšķirībām RNS un proteīnu sintēzē starp blastomēriem. Dažreiz šīs RNS un olbaltumvielas sāk darboties vēlāk.
Svarīgu lomu sasmalcināšanā spēlē citoplazmas dalīšanās - citotomija. Tam ir īpaša morfoģenētiska nozīme, jo tas nosaka drupināšanas veidu. Citotomijas procesā vispirms ar saraušanās mikrofilamentu gredzena palīdzību tiek veidota sašaurināšanās. Šī gredzena montāža notiek tiešā mitotiskās vārpstas polu ietekmē. Pēc citotomijas oligolecitālo olu blastomēri paliek savienoti viens ar otru tikai ar plāniem tiltiem. Tieši šajā laikā ir visvieglāk tos atdalīt. Tas ir tāpēc, ka citotomija samazina saskares laukumu starp šūnām ierobežotā membrānu virsmas dēļ.
Tūlīt pēc citotomijas sākas jaunu šūnu virsmas sekciju sintēze, palielinās kontakta zona, un blastomēri sāk cieši pieskarties. Šķelšanās vagas stiepjas gar robežām starp atsevišķām ovoplazmas sekcijām, atspoguļojot ovoplazmas segregācijas fenomenu. Šī iemesla dēļ dažādu blastomēru citoplazma atšķiras pēc ķīmiskā sastāva.
Sasmalcināšana - koncepcija un veidi. Kategorijas "Drupināšana" klasifikācija un pazīmes 2017, 2018.
XII beigās - XIII gadsimta sākumā. pamatojoties uz Vācijas vispārējo sociālo un ekonomisko atdzimšanu, tika veiktas svarīgas izmaiņas impērijas politiskajā struktūrā: bijušie feodālie apgabali (hercogistes, arhibīskapijas) pārvērtās gandrīz pilnīgi neatkarīgās valstīs .... .
APaugļošana 8. lekcija Apaugļošana ir olšūnas stimulēšana attīstīties ar spermatozoīdu, vienlaikus pārnesot uz olšūnu tēva iedzimto materiālu. Apaugļošanās procesā spermatozoīds saplūst ar olšūnu, savukārt haploīdais kodols ....
SAGATAVOŠANAS PROCESI LEKCIJA Nr.4 Minerālu mazgāšana Mazgāšanu izmanto reto un dārgmetālu, melno metālu rūdu, fosforītu, kaolīnu, būvmateriālu (smilšu, šķembu), ...
Pēc mātīšu un tēviņu priekškodolu saplūšanas, kas zīdītājiem ilgst apmēram 12 stundas, zigota- vienšūnu embrijs. Jau zigotas stadijā kā blastulas atbilstošo posmu attīstības avoti atklājas iespējamās zonas (lat. presumptio - varbūtība, pieņēmums), no kurām pēc tam veidojas dīgļu slāņi.
Rīsi. Cilvēka zigota vīrišķo un sieviešu kodolu (priekškodolu) saplūšanas stadijā: (pēc B.P. Khvatova domām).
1 - sieviešu kodols; 2 - vīrišķais kodols.
Blastulas šķelšanās un veidošanās
Šķelšanās - zigotas secīga mitotiska dalīšanās šūnās (blastomēros) bez meitas šūnu augšanas līdz mātes izmēram.
Iegūtie blastomēri paliek apvienoti vienā embrija organismā. Zigotā starp centrioliem, kas virzās prom uz poliem, veidojas mitotiska vārpsta, ko ievada spermatozoīds. Prokodoli nonāk profāzes stadijā, veidojot kombinētu diploīdu komplektu (iespējamo zonu noteikšanas metodi ierosināja vācu embriologs Vogts) no olšūnas un spermas hromosomām. Izejot cauri visām pārējām mitotiskās dalīšanās fāzēm, zigota tiek sadalīta divās meitas šūnās - blastomēros. Tā kā praktiski nav G 1 perioda, kurā aug dalīšanās rezultātā izveidojušās šūnas, šūnas ir daudz mazākas par mātes šūnu, tāpēc embrija lielums kopumā šajā periodā, neatkarīgi no to veidojošo šūnu skaits, nepārsniedz sākotnējās šūnas - zigotas - izmēru. Tas viss ļāva aprakstīto procesu saukt par drupināšanu (t.i., slīpēšanu), bet smalcināšanas procesā radušās šūnas - blastomērus.
Cilvēka zigotas šķelšanās sākas pirmās dienas beigās, un to raksturo kā pilnīgu nevienmērīgu asinhronu. Pirmajās dienās tas notiek lēni. Pirmā zigotas šķelšanās (dalīšanās) tiek pabeigta pēc 30 stundām, kā rezultātā veidojas 2 blastomēri, kas pārklāti ar apaugļošanas membrānu. Divu blastomēru stadijai seko trīs blastomēru stadija.
No pašas pirmās zigotas saspiešanas veidojas divu veidu blastomēri - “tumšie” un “gaiši”. "Gaišie", mazāki, blastomēri tiek sasmalcināti ātrāk un izkārtoti vienā kārtā ap lielajiem "tumšajiem", kas atrodas embrija vidū. No virsmas "vieglajiem" blastomēriem pēc tam rodas trofoblasts, kas savieno embriju ar mātes ķermeni un nodrošina tā uzturu. Iekšējie, "tumšie", blastomēri veido embrioblastu, no kura veidojas embrija ķermenis un daži ārpusembrionālie orgāni (amnions, dzeltenuma maisiņš, alantoiss).
Sākot no trim dienām, sadrumstalotība notiek ātrāk, un 4. dienā embrijs sastāv no 7-12 blastomēriem. Pēc 50-60 stundām veidojas blīva šūnu uzkrāšanās - morula, un 3-4 dienā sākas blastocistas veidošanās - doba pūslīša, kas piepildīta ar šķidrumu (att.

Rīsi. Cilvēka embrijs agrīnā attīstības stadijā (saskaņā ar Hertigu un Roku).
A - divu blastomēru stadija; B - blastocista; I - embrioblasts, 2 - trofoblasts; 3 - blasto cistas dobums.
Blastocista caur olšūnu pārvietojas uz dzemdi 3 dienu laikā un pēc 4 dienām. iekļūst dzemdē. Blastocista ir brīva dzemdes dobumā 2 dienas (5. un 6. diena), un šo stadiju sauc par brīvu blastocistu. Līdz tam laikam blastocistas palielinās, palielinoties blastomēru - embrioblastu un trofoblastu šūnu - skaitam līdz 100 vai vairāk, jo palielinās dzemdes dziedzeru sekrēta uzsūkšanās trofoblastā, kā arī aktīvās šķidrums ar pašu trofoblastu (Zīm.
Embrioblasts atrodas dzimumšūnu kūlīša ("dīgļu saišķa") veidā, kas no iekšpuses tiek pievienots trofoblastam vienā no blastocistas poliem un sākas implantācija.
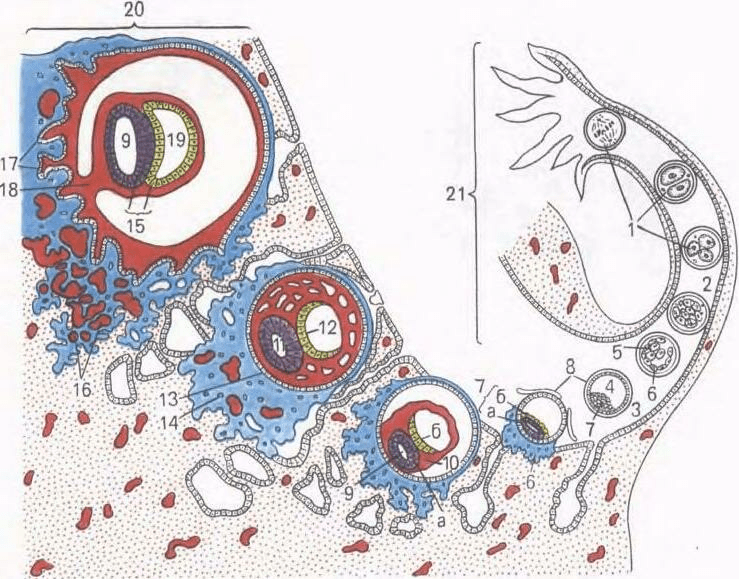
Rīsi. 37. Cilvēka embrija šķelšana, gastrulācija un implantācija (shēma).
1 - drupināšana, 2 - morula; 3 - blastocista; 4 - blastocistas dobums; 5 - embrioblasts; 6 - trofoblasts; 7 - germinālais mezgliņš: a - epiblasts, b - hipoblasts: 8 - apaugļošanas membrāna; 9 - amnija (ektodermālā) pūslīša; 10 - ekstraembrionālā mezoderma; II - ektoderma; 12 - endoderms; 13 - citotrofoblasts; 14 - simpplastotrofoblasts; 15 - dīgļu disks; 16 - spraugas ar mātes asinīm; 17 - horions; 18 - amnija kāja; 19 - dzeltenuma pūslītis; 20 - dzemdes gļotāda; 21 - olšūnas.
Mēslošana ir dzimumšūnu saplūšanas process. Apaugļošanas rezultātā izveidojusies diploīdā šūna - zigota - ir jauna organisma attīstības sākuma stadija. Mēslošanas process sastāv no trim secīgām fāzēm:
a) gametu konverģence(Hamoni (gamētu hormoni), no vienas puses, aktivizē spermatozoīdu kustību, no otras puses, to salīmēšanu.) Spermatozoīda saskares brīdī ar olšūnas membrānu notiek akrosomāla reakcija, kuras laikā , akrosomas proteolītisko enzīmu ietekmē olšūnas membrānas izšķīst. Turklāt olšūnas un spermas plazmas membrānas saplūst un caur iegūto citoplazmas tiltu tiek apvienotas abu gametu citoplazmas. Pēc tam spermatozoīda kodols un centriole nonāk olšūnas citoplazmā, un spermatozoīdu membrāna tiek iestrādāta olšūnas membrānā. Spermas astes daļa lielākajai daļai dzīvnieku arī nonāk olšūnā, bet pēc tam atdalās un izšķīst, nespēlējot nekādu lomu turpmākajā attīstībā;
b) olas aktivizēšanaSakarā ar to, ka spermatozoīdu membrānas daļa ir caurlaidīga nātrija joniem, pēdējie sāk iekļūt olšūnā, mainot šūnas membrānas potenciālu. Tad viļņa veidā, kas izplatās no gametu saskares punkta, palielinās kalcija jonu saturs, kam seko garozas granulu izšķīšana viļņa veidā. Tajā pašā laikā izdalītie specifiskie fermenti veicina dzeltenuma membrānas atdalīšanu; tas sacietē, tas ir apaugļošanas apvalks. Visi aprakstītie procesi ir tā sauktā kortikālā reakcija .;
c) gametu saplūšana jeb singāmijaOlšūna tikšanās laikā ar spermu parasti atrodas vienā no mejozes stadijām, ko bloķē noteikts faktors. Lielākajai daļai mugurkaulnieku šis bloks notiek II metafāzes stadijā; daudziem bezmugurkaulniekiem, kā arī trīs zīdītāju sugām (zirgiem, suņiem un lapsām) blokāde notiek diakinēzes stadijā. Vairumā gadījumu meiotiskais bloks tiek noņemts pēc olšūnas aktivizēšanas apaugļošanās dēļ. Kamēr olšūnā ir pabeigta mejoze, tiek pārveidots spermas kodols, kas tajā ir iekļuvis. Tas izpaužas starpfāzes un pēc tam profāzes kodola formā. Šajā laikā DNS dubultojas un vīrišķais kodols saņem p2c atbilstošu iedzimtības materiāla daudzumu, t.i. satur haploīdu reducētu hromosomu komplektu. Olšūnas kodols, kas pabeidzis mejozi, pārvēršas par sievišķo priekškodolu, iegūstot arī n2c. Abi priekškodoli veic sarežģītas kustības, pēc tam tuvojas un saplūst (sinkarions), veidojot kopēju metafāzes plāksni. Faktiski šis ir gametu galīgās saplūšanas brīdis - singāmija. Pirmā zigotas mitotiskā dalīšanās rezultātā veidojas divas embrionālās šūnas (blastomēri) ar 2n2c hromosomu komplektu katrā.
Zigota - diploīda (satur pilnu dubultu hromosomu komplektu) šūna, kas rodas apaugļošanas rezultātā (olšūnas un spermas saplūšana). Zigota ir totipotenta (tas ir, kas spēj ražot jebkuru citu) šūna.
Cilvēkiem pirmais zigotas mitotiskais dalījums notiek aptuveni 30 stundas pēc apaugļošanas, kas ir saistīts ar sarežģītajiem sagatavošanās procesiem pirmajam saspiešanas cēlienam. Tiek sauktas šūnas, kas veidojas zigotas sasmalcināšanas rezultātā
blastomēri. Pirmos zigotas dalījumus sauc par "sasmalcināšanu", jo šūna tiek sasmalcināta: pēc katras dalīšanās meitas šūnas kļūst arvien mazākas, un starp dalījumiem nav šūnu augšanas stadijas.
Sadalīšana - šī ir virkne secīgu zigotas un turpmāko blastomēru mitotisku dalījumu, kas beidzas ar daudzšūnu embrija veidošanos. blastula. Starp secīgām dalīšanām šūnu augšana nenotiek, bet DNS obligāti tiek sintezēta. Ooģenēzes laikā tiek uzkrāti visi DNS prekursori un nepieciešamie fermenti. Pirmkārt, blastomēri atrodas blakus viens otram, veidojot šūnu kopu, ko sauc morula. Tad starp šūnām veidojas dobums - blastocoel, piepildīta ar šķidrumu. Šūnas tiek izstumtas uz perifēriju, veidojot blastulas sienu - blastoderma. Kopējais embrija izmērs šķelšanās beigās blastulas stadijā nepārsniedz zigotas izmēru. Sasmalcināšanas perioda galvenais rezultāts ir zigotas pārvēršanās par daudzšūnu vienslāņains embrijs.
Sasmalcināšanas morfoloģija.Parasti blastomēri ir sakārtoti stingrā secībā attiecībā pret otru un olas polāro asi. Sasmalcināšanas secība jeb metode ir atkarīga no dzeltenuma daudzuma, blīvuma un sadalījuma olā. Saskaņā ar Sachs-Hertwig noteikumiem šūnas kodols mēdz atrasties citoplazmas centrā bez dzeltenuma, bet šūnu dalīšanās vārpstas virzienā - šīs zonas lielākās daļas virzienā.
Oligo- un mezocitālā Olās šķelšanās ir pilnīga jeb holoblastiska. Šāda veida drupināšana ir sastopama nēģiem, dažām zivīm, visiem abiniekiem, kā arī marsupialiem un placentas zīdītājiem. Pilnībā sasmalcinot, pirmā dalījuma plakne atbilst divpusējās simetrijas plaknei. Otrā dalījuma plakne ir perpendikulāra pirmā dalījuma plaknei. Abas pirmo divu nodaļu vagas ir meridiāniskas, t.i. sākas no dzīvnieku pola un izplatās uz veģetatīvo polu. Olšūna ir sadalīta četros vairāk vai mazāk vienāda izmēra blastomēros. Trešā dalījuma plakne ir perpendikulāra pirmajiem diviem platuma virzienā. Pēc tam mezolecitālajās olās astoņu blastomēru stadijā izpaužas nevienmērīga drupināšana. Uz dzīvnieku staba atrodas četri mazāki blastomēri - mikromēri, uz veģetatīvā pola - četri lielāki - makromēri. Tad sadalīšana atkal notiek meridiānu plaknēs un pēc tam atkal platuma.
Polilecitālā kaulaino zivju, rāpuļu, putnu, kā arī monotrēmu zīdītāju olās sadrumstalotība ir daļēja jeb meroblastiska, t.i. aptver tikai citoplazmu, kurā nav dzeltenuma. Tas atrodas tieva diska veidā pie dzīvnieka staba, tāpēc šāda veida drupināšanu sauc par diskveida. Raksturojot smalcināšanas veidu, tiek ņemts vērā arī blastomēru relatīvais novietojums un dalīšanās ātrums. Ja blastomēri ir izvietoti rindās viena virs otras pa rādiusiem, drupināšanu sauc par radiālu. Tas ir raksturīgs hordatiem un adatādaiņiem. Dabā ir arī citi blastomēru telpiskā izvietojuma varianti sasmalcināšanas laikā, kas nosaka tādus tā veidus kā spirāle gliemjiem, divpusējā ascaris, anarhiska medūzām.
Tika konstatēta saistība starp dzeltenuma sadalījumu un sinhronisma pakāpi dzīvnieku un veģetatīvo blastomēru sadalījumā. Adatādaiņu oligolecitālajās olās šķelšanās notiek gandrīz sinhroni, mezocitālajās olšūnās sinhronija tiek traucēta pēc trešās dalīšanās, jo veģetatīvie blastomēri lielā dzeltenuma daudzuma dēļ sadalās lēnāk. Formās ar daļēju šķelšanos dalīšanās jau no paša sākuma ir asinhrona, un blastomēri, kas ieņem centrālo pozīciju, sadalās ātrāk.
Sasmalcināšanas beigās veidojas blastula. Blastulas veids ir atkarīgs no sasmalcināšanas veida un līdz ar to arī no olas veida.
Molekulāri ģenētisko un bioķīmisko procesu iezīmes sasmalcināšanas laikā.Kā minēts iepriekš, mitotiskie cikli šķelšanās periodā ir ievērojami saīsināti, īpaši pašā sākumā.
Piemēram, viss skaldīšanas cikls jūras ežu olās ilgst 30-40 minūtes, savukārt S-fāzes ilgums ir tikai 15 minūtes. GI un G2 periodi praktiski nav, jo olšūnas citoplazmā ir izveidots nepieciešamais visu vielu krājums, un jo lielāks tas ir, jo lielāks tas ir. Pirms katras dalīšanas notiek DNS un histonu sintēze.
Ātrums, ar kādu replikācijas dakša šķelšanās laikā pārvietojas gar DNS, ir normāls. Tajā pašā laikā blastomēru DNS ir vairāk iniciācijas punktu nekā somatiskajās šūnās. DNS sintēze notiek visos replikonos vienlaicīgi, sinhroni. Tāpēc DNS replikācijas laiks kodolā sakrīt ar viena, turklāt saīsināta, replikona dubultošanās laiku. Tika parādīts, ka tad, kad no zigotas tiek izņemts kodols, notiek šķelšanās un embrijs savā attīstībā sasniedz gandrīz blastulas stadiju. Tālākā attīstība apstājas.
Šķelšanās sākumā cita veida kodolaktivitātes, piemēram, transkripcijas, praktiski nav. Dažādu veidu olās gēnu transkripcija un RNS sintēze sākas dažādos posmos. Gadījumos, kad citoplazmā ir daudz dažādu vielu, kā, piemēram, abiniekiem, transkripcija neaktivizējas uzreiz. RNS sintēze tajos sākas agrīnās blastulas stadijā. Gluži pretēji, zīdītājiem RNS sintēze sākas jau divu blastomēru stadijā.
Šķelšanās periodā veidojas RNS un proteīni, līdzīgi tiem, kas sintezējas oogenēzes laikā. Tie galvenokārt ir histoni, šūnu membrānas proteīni un fermenti, kas nepieciešami šūnu dalīšanai. Šīs olbaltumvielas tiek izmantotas nekavējoties kopā ar proteīniem, kas iepriekš tika uzglabāti olšūnu citoplazmā. Līdz ar to sasmalcināšanas periodā ir iespējama olbaltumvielu sintēze, kas iepriekš nebija. To apstiprina dati par reģionālām atšķirībām RNS un proteīnu sintēzē starp blastomēriem. Dažreiz šīs RNS un olbaltumvielas sāk darboties vēlāk.
Svarīga loma smalcināšanā ir citoplazmas dalīšanai - citotomijai. Tam ir īpaša morfoģenētiska nozīme, jo tas nosaka drupināšanas veidu. Citotomijas procesā vispirms ar saraušanās mikrofilamentu gredzena palīdzību tiek veidota sašaurināšanās. Šī gredzena montāža notiek tiešā mitotiskās vārpstas polu ietekmē. Pēc citotomijas oligolecitālo olu blastomēri paliek savienoti viens ar otru tikai ar plāniem tiltiem. Tieši šajā laikā tos ir visvieglāk atdalīt. Tas ir tāpēc, ka citotomijas rezultātā samazinās saskares zona starp šūnām ierobežotā membrānu virsmas dēļ. Uzreiz pēc citotomijas sākas jaunu šūnu virsmas posmu sintēze, palielinās kontakta zona un sāk veidoties blastomēri. cieši pieskarties. Šķelšanās vagas stiepjas gar robežām starp atsevišķām ovoplazmas sekcijām, atspoguļojot ovoplazmas segregācijas fenomenu. Tāpēc dažādu blastomēru citoplazma atšķiras pēc ķīmiskā sastāva.
Embrionālās attīstības galveno posmu raksturojums un nozīme: gastrulācija, histo- un organoģenēze. 2 un 3 slāņu embriju veidošanās. Mezodermas veidošanās metodes. Dīgļu slāņu atvasinājumi. Šo procesu regulējošie mehānismi gēnu un šūnu līmenī.
Histoģenēze- (no grieķu. histos - audi it ... ģenēze), procesu kopums, kas attīstījies filoģenēzē, nodrošinot audu veidošanos, pastāvēšanu un atjaunošanos ar tiem raksturīgajām orgānu īpatnībām daudzšūnu organismu ontoģenēzē. Iespējas. Organismā audi attīstās no noteiktiem embrionālie rudimenti (atvasinātie dīgļu slāņi), kas veidojas embrionālo šūnu proliferācijas, kustības (morfoģenētisko kustību) un adhēzijas rezultātā agrīnās attīstības stadijās organoģenēzes procesā. Būtnes, G. faktors - noteikto šūnu diferenciācija, kas izraisa dažādu morfolu rašanos. un fiziol. šūnu veidi, kas regulāri tiek izplatīti organismā. Dažreiz G. seko starpšūnu vielas veidošanās. Svarīga loma G. virziena noteikšanā pieder starpšūnu kontaktu mijiedarbībai un hormonālajai ietekmei. Šūnu kopa, kas veic noteiktu G., ir iedalītas vairākās grupās: senču (cilmes) šūnas, kas spēj diferencēt un papildināt sava veida zaudējumus, daloties; cilmes šūnas (tā sauktās puscilmes šūnas) - diferencē, bet saglabā spēju dalīties; nobriedis dif. šūnas. Reparative G. pēcdzemdību periodā ir pamatā bojāto vai daļēji zaudēto audu atjaunošanai. Īpašības, G. izmaiņas var izraisīt audzēja rašanos un augšanu.
Organoģenēze(no grieķu organon — orgāns, ģenēze — attīstība, izglītība) — orgānu attīstības jeb veidošanās process cilvēku un dzīvnieku embrijā. Organoģenēze seko agrākiem embrionālās attīstības periodiem (sk. Embrijs) - olšūnu sasmalcināšanu, gastrulāciju un notiek pēc orgānu un audu galveno rudimentu (grāmatzīmju) izolēšanas. Organoģenēze notiek paralēli histoģenēzei (sk.) vai audu attīstībai. Atšķirībā no audiem, kuru avots ir viens no embrionālajiem pamatiem, orgāni, kā likums, rodas, piedaloties vairākiem (no diviem līdz četriem) dažādiem rudimentiem (sk. Dīgļu slāņus), izraisot dažādus audu komponentus. orgāns. Piemēram, kā daļa no zarnu sienas epitēlijs, kas klāj orgānu dobumu un dziedzerus, attīstās no iekšējā dīgļu slāņa - endodermas (sk.), saistaudi ar asinsvadiem un gludajiem muskuļiem - no mezenhīma (sk.), mezotēlijs, kas aptver zarnu serozo membrānu, - no splanhnotoma viscerālās lapas, t.i., vidējās germinālās lapas - mezodermas, un orgāna nervi un gangliji - no nervu rudimenta. Āda veidojas, piedaloties ārējam dīgļu slānim - ektodermai (sk.), no kuras attīstās epiderma un tās atvasinājumi (mati, tauku un sviedru dziedzeri, nagi u.c.), un dermatomas, no kurām rodas mezenhīms, diferencējoties ādas saistaudu pamatne (derma). Nervi un nervu gali ādā, tāpat kā citur, ir nervu dīgļu atvasinājumi. Daži orgāni veidojas no viena dīgļa, piemēram, kauls, asinsvadi, limfmezgli - no mezenhīma; tomēr arī šeit anlagē ieaug nervu sistēmas rudimenta atvasinājumi - nervu šķiedras, un veidojas nervu gali.
Ja histoģenēze galvenokārt sastāv no šūnu vairošanās un specializācijas, kā arī starpšūnu vielu un citu ne-šūnu struktūru veidošanās, tad galvenie organoģenēzes pamatā ir dīgļu slāņu veidošanās krokas, izvirzījumi, izvirzījumi, sabiezējumi, nelīdzenumi. augšana, saplūšana vai sadalīšana (atdalīšana), kā arī dažādu grāmatzīmju savstarpēja dīgšana. Cilvēkiem organoģenēze sākas 3. nedēļas beigās un kopumā beidzas līdz 4. intrauterīnās attīstības mēnesim. Tomēr vairāku embrija pagaidu (pagaidu) orgānu - horiona, amniona, dzeltenuma maisiņa - attīstība sākas jau pirmās nedēļas beigās, un daži galīgie (galīgie) orgāni veidojas vēlāk nekā citi (piemēram, limfa). mezgli - sākot no pēdējiem intrauterīnās attīstības mēnešiem un līdz pubertātes sākumam).
Gastrulācija -vienslāņa embrijs - blastula - pārvēršas par daudzslāņu - divslāņu vai trīsslāņu, ko sauc par gastrulu (no grieķu gaster - kuņģis deminutīvā nozīmē).
Primitīvās hordās, piemēram, lancetē, viendabīga viena slāņa blastoderma gastrulācijas laikā tiek pārveidota par ārējo dīgļu slāni, ektodermu, un iekšējo dīgļu slāni - endodermu. Endoderma veido primāro zarnu ar dobumu iekšpusē, gastrocoel. Atvērumu, kas ved uz gastrokolu, sauc par blastoporu vai primāro muti. Divi dīgļu slāņi ir gastrulācijas morfoloģiskās pazīmes. To esamība noteiktā attīstības stadijā visos daudzšūnu dzīvniekos, sākot no koelenterātiem līdz augstākajiem mugurkaulniekiem, ļauj domāt par dīgļu slāņu homoloģiju un visu šo dzīvnieku izcelsmes vienotību. Mugurkaulniekiem bez abiem minētajiem gastrulācijas laikā veidojas trešais dīgļu slānis - mezoderma, kas ieņem vietu starp ekto- un endodermu. Vidējā dīgļu slāņa, kas ir hordomesoderma, attīstība ir mugurkaulnieku gastrulācijas fāzes evolucionāra komplikācija, un tā ir saistīta ar to attīstības paātrināšanos agrīnā embrioģenēzes stadijā. Primitīvākos hordātos, piemēram, lancetē, hordomesoderma parasti veidojas nākamās fāzes sākumā pēc gastrulācijas – organoģenēzes. Dažu orgānu attīstības laika maiņa attiecībā pret citiem pēcnācējiem, salīdzinot ar senču grupām, ir heterohronijas izpausme. Izmaiņas svarīgāko orgānu veidošanās laikā evolūcijas gaitā nav nekas neparasts.
Gastrulācijas procesu raksturo svarīgas šūnu transformācijas, piemēram, grupu un atsevišķu šūnu virzītas kustības, selektīva šūnu pavairošana un šķirošana, citodiferenciācijas un indukcijas mijiedarbības sākums.
Gastrulācijas metodessavādāk. Izšķir četrus telpiski virzītu šūnu kustību veidus, kas noved pie embrija transformācijas no viena slāņa uz daudzslāņu.
Invaginācija- vienas no blastodermas sekcijām invaginācija uz iekšu kā veselu slāni. Lancetē invaginējas veģetatīvā pola šūnas, abiniekiem invaginācija notiek uz robežas starp dzīvnieku un veģetatīvo polu pelēkā pusmēness reģionā. Invaginācijas process ir iespējams tikai olās ar nelielu vai vidēju dzeltenuma daudzumu.
epibolija- piesārņojums ar mazām dzīvnieku pola šūnām, lielākas, atpaliekot dalīšanās ātrumā un mazāk kustīgās veģetatīvā pola šūnās. Šis process ir skaidri izteikts abiniekiem.
Denominācija- blastodermas šūnu stratifikācija divos slāņos, kas atrodas viens virs otra. Delamināciju var novērot embriju diskoblastulās ar daļēju saspiešanas veidu, piemēram, rāpuļiem, putniem un olnīcu zīdītājiem. Delaminācija izpaužas placentas zīdītāju embrioblastos, izraisot hipoblastu un epiblastu veidošanos.
Imigrācija- grupu vai atsevišķu šūnu pārvietošanās, kas nav apvienotas vienā slānī. Imigrācija notiek visos embrijos, bet visvairāk raksturīga augstāko mugurkaulnieku gastrulācijas otrajai fāzei. Katrā konkrētā embrioģenēzes gadījumā parasti tiek apvienotas vairākas gastrulācijas metodes.
Gastrulācijas morfoloģija.Blastulas rajonā, no kuras šūnu materiāla gastrulācijas un agrīnas organoģenēzes (neirulācijas) laikā parasti veidojas pilnīgi noteikti dīgļu slāņi un orgāni. Invaginācija sākas pie veģetatīvā pola. Ātrākas dalīšanās dēļ dzīvnieka pola šūnas aug un iespiež veģetatīvā pola šūnas blastulā. To veicina citoplazmas stāvokļa izmaiņas šūnās, kas veido blastoporas lūpas un tām blakus. Invaginācijas dēļ blastocoels samazinās un gastrocoel palielinās. Vienlaikus ar blastokoela izzušanu ektoderma un endoderma nonāk ciešā saskarē. Lanceletā, tāpat kā visās deuterostomās (tie ietver adatādaiņu tipu, hordātu tipu un dažus citus mazus dzīvnieku veidus), blastoporu reģions pārvēršas par organisma astes daļu, atšķirībā no protostomiem, kuros atbilst blastopora. uz galvas daļu. Mutes atvere deuterostomās veidojas embrija galā pretī blastoporai. Gastrulācijai abiniekiem ir daudz kopīga ar lancetes gastrulāciju, taču, tā kā to olās dzeltenums ir daudz lielāks un tas atrodas galvenokārt veģetatīvā polā, lielie amfiblastu blastomēri nespēj izspiesties uz iekšu.Invaginācija iet mazliet savādāk. Uz robežas starp dzīvnieku un veģetatīvo polu pelēkā sirpja reģionā šūnas vispirms tiek spēcīgi ievilktas uz iekšu, iegūstot “kolbas formas” formu, un pēc tam tās velk blastulas virsmas slāņa šūnas kopā ar viņiem. Parādās pusmēness rieva un muguras blastoporas lūpa. Tajā pašā laikā mazākas dzīvnieku pola šūnas, daloties ātrāk, sāk virzīties uz veģetatīvo polu. Muguras lūpas rajonā tās pagriežas uz augšu un invaginējas, un sānos un sānos, kas atrodas pretī sirpjveida rievai, aug lielākas šūnas. Tad processepibolija noved pie blastoporas sānu un ventrālo lūpu veidošanās. Blastopora noslēdzas gredzenā, kura iekšpusē kādu laiku redzamas lielas veģetatīvā pola gaismas šūnas tā sauktā dzeltenuma korķa veidā. Vēlāk tie tiek pilnībā iegremdēti uz iekšu, un blastopora sašaurinās. Izmantojot apzīmēšanas metodi ar vitālajām (vitālajām) krāsām abiniekiem, detalizēti pētītas blastulas šūnu kustības gastrulācijas laikā.pēc tam pašos orgānos. Ir zināms, ka anurānos iespējamās notohorda un mezodermas materiāls blastulas stadijā atrodas nevis uz tās virsmas, bet gan amfiblastulas sienas iekšējos slāņos, tomēr aptuveni attēlā parādītajos līmeņos. Abinieku attīstības agrīno posmu analīze ļauj secināt, ka ovoplazmas segregācijai, kas skaidri izpaužas olšūnā un zigotā, ir liela nozīme to šūnu likteņa noteikšanā, kuras ir mantojušas noteiktu citoplazmas apgabalu. Gastrulācijai embrijos ar meroblastisku šķelšanās un attīstības veidu ir savas īpašības. Putniem tas sākas pēc saspiešanas un blastulas veidošanās embrija šķērsošanas laikā caur olšūnu. Līdz olas dēšanas brīdim embrijs jau sastāv no vairākiem slāņiem: augšējo slāni sauc par epiblastu, apakšējo slāni sauc par primāro hipoblastu. Starp tiem ir šaura sprauga - blastocoel. Tad veidojas sekundārais hipoblasts, kura veidošanās metode nav līdz galam skaidra. Ir pierādījumi, ka primārās dzimumšūnas rodas putnu primārajā hipoblastā, bet sekundārās veido ārpusembrionālo endodermu. Primāro un sekundāro hipoblastu veidošanos uzskata par parādību pirms gastrulācijas. Galvenie gastrulācijas notikumi un triju dīgļu slāņu galīgā veidošanās sākas pēc olšūnas, sākot ar inkubācijas sākumu. Epiblasta aizmugurējā daļā notiek šūnu uzkrāšanās nevienmērīgā šūnu dalīšanās ātruma un to kustības rezultātā no epiblasta sānu daļām uz centru, viena pret otru. Izveidojas tā sauktā primārā svītra, kas stiepjas virzienā uz galvas galu. Primārās sloksnes centrā ir izveidota primārā rieva, bet gar malām - primārās izciļņi. Primārās sloksnes galvas galā parādās sabiezējums - Hensena mezgls, un tajā - primārā fossa. Kad epiblastu šūnas nonāk primārajā rievā, mainās to forma. Tie atgādina abinieku gastrulas "kolbas formas" šūnu formu. Pēc tam šīs šūnas kļūst zvaigžņu formā un nogrimst zem epiblasta, veidojot mezodermu. Endoderma veidojas uz primārā un sekundārā hipoblasta bāzes, pievienojot jaunas paaudzes endodermālās šūnas, kas migrē no augšējiem slāņiem – blastodermu. Vairāku paaudžu endodermālo šūnu klātbūtne liecina par gastrulācijas perioda pagarināšanos laikā. Daļa šūnu, kas migrē no epiblasta caur Hensena mezglu, veido nākotnes notohordu. Vienlaikus ar horda ierosināšanu un pagarināšanu Hensena mezgls un primārā svītra pakāpeniski izzūd virzienā no priekšpuses uz astes galu. Tas atbilst blastoporas sašaurināšanās un aizvēršanās. Primārajai svītrai saraujoties, tā atstāj aiz sevis izveidotās embrija aksiālo orgānu daļas virzienā no galvas uz astes daļām. Šķiet saprātīgi uzskatīt šūnu kustības cāļu embrijā par homologu epiboliju un primāro svītru un Hensena mezglu par homologiem abinieku gastrulas muguras lūpas blastoporai. Interesanti atzīmēt, ka zīdītāju embriju šūnas, neskatoties uz to, ka šajos dzīvniekos olās ir neliels dzeltenuma daudzums un sadrumstalotība ir pilnīga, gastrulācijas fāzē tās saglabā rāpuļu un putnu embrijiem raksturīgās kustības. Tas apstiprina ideju par zīdītāju izcelsmi no senču grupas, kuru olas bija bagātas ar dzeltenumu.
Gastrulācijas stadijas iezīmes.Gastrulāciju raksturo dažādi šūnu procesi. Šūnu mitotiskā reprodukcija turpinās, un tai ir atšķirīga intensitāte dažādās embrija daļās. Tomēr gastrulācijas raksturīgākā iezīme ir šūnu masu kustība. Tas noved pie embrija struktūras izmaiņām un tā transformācijas no blastulas uz gastrulu. Šūnas tiek šķirotas pēc to piederības dažādiem dīgļu slāņiem, kuru iekšpusē tās viena otru "atpazīst". Gastrulācijas fāze iezīmē citodiferenciācijas sākumu, kas nozīmē pāreju uz sava genoma bioloģiskās informācijas aktīvu izmantošanu. Viens no ģenētiskās aktivitātes regulatoriem ir embrionālo šūnu citoplazmas atšķirīgais ķīmiskais sastāvs, kas veidojas ovoplazmas segregācijas rezultātā. Tātad abinieku ektodermālajām šūnām ir tumša krāsa pigmenta dēļ, kas tajās nokļuva no olas dzīvnieka pola, un endodermas šūnas ir gaišas, jo tās nāk no olas veģetatīvā pola. Gastrulācijas laikā embrionālās indukcijas loma ir ļoti liela. Ir pierādīts, ka primārās svītras parādīšanās putniem ir hipoblasta un epiblasta induktīvās mijiedarbības rezultāts. Hipoblastam ir polaritāte. Hipoblasta stāvokļa maiņa attiecībā pret epiblastu izraisa izmaiņas primitīvās svītras orientācijā. Visi šie procesi ir sīki aprakstīti nodaļā. Jāatzīmē, ka tādas embrija integritātes izpausmes kā noteikšana, embrionālā regulēšana un integrācija tam ir raksturīgas gastrulācijas laikā tādā pašā mērā kā šķelšanās laikā.
Mezodermas veidošanās - Visiem dzīvniekiem, izņemot zarnu dobumus, saistībā ar gastrulāciju (paralēli tai vai nākamajā stadijā gastrulācijas dēļ) rodas arī trešais dīgļu slānis - mezoderma. Šī ir šūnu elementu kolekcija, kas atrodas starp ektodermu un endodermu, t.i., blastocelē. Kā šis. Tādējādi embrijs kļūst nevis divslāņu, bet trīsslāņu. Augstākiem mugurkaulniekiem embriju trīsslāņu struktūra rodas jau gastrulācijas procesā, savukārt apakšējos hordātos un visos citos veidos pašas gastrulācijas rezultātā veidojas divslāņu embrijs.
Var noteikt divus principiāli atšķirīgus mezodermas parādīšanās veidus:teloblastisks, kas raksturīgs Protostomijai, un enterocoelic, kas raksturīgs Deute-rosiomiai. protostos gastrulācijas laikā, uz robežas starp ektodermu un endodermu, blastoporas malās jau ir divas lielas šūnas, kas atdala mazās šūnas no sevis (dalīšanās dēļ). Tādējādi veidojas vidējais slānis - mezoderma. Teloblasti, dodot jaunas un jaunas mezodermas šūnu paaudzes, paliek embrija aizmugurējā galā. Šī iemesla dēļ šo mezodermas veidošanās metodi sauc par teloblastisku (no grieķu telos — beigas).
Izmantojot enterokoela metodi, topošās mezodermas šūnu kopums parādās primārās zarnas kabatveida izvirzījumu veidā (tās sieniņu izvirzīšana blastokoelā). Šie izvirzījumi, kuros iekļūst primārās zarnu dobuma daļas, ir izolēti no zarnas un atdalīti no tās maisiņu veidā. Maisu dobums pārvēršas par veselumu, ti, par sekundāro ķermeņa dobumu, celomiskos maisiņus var iedalīt vidējā dīgļu slāņa segmentos neatspoguļo visu variāciju un noviržu daudzveidību, kas ir stingri dabiska atsevišķām dzīvnieku grupām. . Līdzīgi kā teloblastiskai, bet tikai ārēji, mezodermas veidošanās metode ir nevis teloblastu dalīšana, bet gan nepāra blīva primordija (šūnu grupas) parādīšanās blastoporas malās, kas pēc tam sadalās divās simetriskās šūnu joslās. Ar enteroceles metodi mezodermas primordium var būt pārī vai nesapārots; dažos gadījumos veidojas divi simetriski celomiskie maisi, savukārt citos vispirms veidojas viens kopīgs celomiskais maiss, kas pēc tam sadalās divās simetriskās daļās.
Dīgļu slāņu atvasinājumi.Trīs dīgļu slāņu tālākais liktenis ir atšķirīgs.
No ektodermas attīstās: visi nervu audi; ādas ārējie slāņi un tās atvasinājumi (mati, nagi, zobu emalja) un daļēji mutes dobuma, deguna dobumu un tūpļa gļotāda.
Endodermas rezultātā veidojas visa gremošanas trakta – no mutes dobuma līdz tūpļa – odere un visi tā atvasinājumi, t.i. aizkrūts dziedzeris, vairogdziedzeris, epitēlijķermenīšu dziedzeri, traheja, plaušas, aknas un aizkuņģa dziedzeris.
No mezodermas veidojas: visu veidu saistaudi, kaulu un skrimšļu audi, asinis un asinsvadu sistēma; visu veidu muskuļu audi; ekskrēcijas un reproduktīvās sistēmas, ādas dermālais slānis.
Pieaugušam dzīvniekam ir ļoti maz endodermālas izcelsmes orgānu, kas nesatur nervu šūnas, kas iegūtas no ektodermas. Katrs svarīgais orgāns satur arī mezodermas atvasinājumus – asinsvadus, asinis, bieži vien arī muskuļus, tā ka dīgļu slāņu strukturālā izolācija tiek saglabāta tikai to veidošanās stadijā. Jau pašā attīstības sākumā visi orgāni iegūst sarežģītu struktūru, un tie ietver visu dīgļu slāņu atvasinājumus.
Jauna organisma sākumu dod apaugļota olšūna (izņemot partenoģenēzes un veģetatīvās vairošanās gadījumus). Apaugļošana ir divu dzimumšūnu (gametu) saplūšanas process savā starpā, kura laikā tiek veiktas divas dažādas funkcijas: seksuālā (apvienojot divu vecāku indivīdu gēnus) un reproduktīvā (jauna organisma rašanās). Pirmā no šīm funkcijām ietver gēnu pārnešanu no vecākiem uz pēcnācējiem, otrā - tādu reakciju un kustību ierosināšanu olšūnas citoplazmā, kas ļauj attīstībai turpināties. Apaugļošanas rezultātā olšūnā tiek atjaunots dubults (2p) hromosomu komplekts. Centrosoma, ko ievada sperma, pēc dubultošanās veido šķelšanās vārpstu, un zigota nonāk embrioģenēzes 1. stadijā - sasmalcināšanas stadijā. Mitozes rezultātā no zigotas veidojas 2 meitas šūnas - blastomēri.
Prezigotiskais periods
Prezigotiskais attīstības periods ir saistīts ar gametu veidošanos (gametoģenēzi). Sievietēm olšūnu veidošanās sākas pat pirms viņu piedzimšanas, un katrai dotajai olšūnai beidzas tikai pēc tā apaugļošanas. Līdz piedzimšanai sievietes auglis olnīcās satur aptuveni divus miljonus pirmās kārtas oocītu (tās joprojām ir diploīdas šūnas), un tikai 350 - 450 no tiem sasniegs otrās kārtas oocītu (haploīdu šūnu) stadiju, pārvēršoties. olās (pa vienai viena menstruālā cikla laikā). Atšķirībā no sievietēm dzimumšūnas sēkliniekos (sēkliniekos) vīriešiem sāk veidoties tikai ar pubertātes sākumu. Spermas veidošanās perioda ilgums ir aptuveni 70 dienas; uz vienu gramu sēklinieku svara spermatozoīdu skaits ir aptuveni 100 miljoni dienā.
Mēslošana
Mēslošana - vīrišķās reproduktīvās šūnas (spermas) saplūšana ar mātīti (olšūnu, olšūnu), kā rezultātā veidojas zigota – jauns vienšūnu organisms. Apaugļošanas bioloģiskā nozīme ir vīriešu un sieviešu dzimumšūnu kodolmateriāla apvienošana, kas noved pie tēva un mātes gēnu apvienošanas, hromosomu diploīdā komplekta atjaunošanas, kā arī olšūnas aktivizēšanas, tas ir, tā stimulēšana embriju attīstībai. Olas savienojums ar spermu parasti notiek olvados piltuvveida daļā pirmo 12 stundu laikā pēc ovulācijas.
Sēklu šķidrums, kas dzimumakta laikā nonāk sievietes makstī, parasti satur no 60 līdz 150 miljoniem spermatozoīdu, kas, pateicoties kustībām ar ātrumu 2-3 mm minūtē, pastāvīgām viļņainām dzemdes un caurulīšu kontrakcijām un sārmainai videi, jau pēc 1-2 minūtēm pēc dzimumakta tie sasniedz dzemdi, bet pēc 2-3 stundām - olvadu gala posmus, kur parasti saplūst ar olšūnu. Notiek monospermiskā (olšūnā iekļūst viens spermatozoīds) un polispermas (olšūnā iekļūst divi vai vairāki spermatozoīdi, bet tikai viens spermas kodols saplūst ar olšūnas kodolu) apaugļošana. Spermas aktivitātes saglabāšanu, to pārvietošanās laikā sievietes dzimumorgānos, veicina nedaudz sārmainā dzemdes kakla kanāla vide, kas piepildīta ar gļotādu aizbāzni. Orgasma laikā dzimumakta laikā gļotādas aizbāznis no dzemdes kakla kanāla tiek daļēji izspiests un pēc tam ievilkts tajā un tādējādi veicina ātrāku spermatozoīdu iekļūšanu no maksts (kur veselai sievietei parasti ir nedaudz skāba vide) vairāk. labvēlīga dzemdes kakla un dzemdes dobuma vide. Spermatozoīdu izkļūšanu caur dzemdes kakla kanāla gļotādas aizbāzni veicina arī krasā gļotu caurlaidības palielināšanās ovulācijas dienās. Atlikušajās menstruālā cikla dienās gļotādas korķim ir ievērojami zemāka spermatozoīdu caurlaidība.
Daudzi spermatozoīdi, kas atrodas sievietes dzimumorgānu traktā, var saglabāt apaugļošanās spēju 48-72 stundas (dažreiz pat līdz 4-5 dienām). Ovulēta olšūna paliek dzīvotspējīga aptuveni 24 stundas. Ņemot to vērā, vislabvēlīgākais laiks apaugļošanai ir nobrieduša folikulu plīsuma periods, kam seko olšūnas piedzimšana, kā arī 2-3 diena pēc ovulācijas. Sievietēm, kuras izmanto fizioloģisko kontracepcijas metodi, jāapzinās, ka ovulācijas laiks var svārstīties un olšūnas un spermas dzīvotspēja var būt ievērojami ilgāka. Neilgi pēc apaugļošanas sākas zigotas šķelšanās un embriju veidošanās.
ZigotaZigota (grieķu zigota pārī) ir diploīda (satur pilnīgu dubultu hromosomu komplektu) šūna, kas rodas apaugļošanas (olšūnas un spermas šūnas saplūšanas) rezultātā. Zigota ir totipotenta (tas ir, kas spēj ražot jebkuru citu) šūna. Šo terminu ieviesa vācu botāniķis E. Strasburgers.
Cilvēkiem pirmais zigotas mitotiskais dalījums notiek aptuveni 30 stundas pēc apaugļošanas, kas ir saistīts ar sarežģītajiem sagatavošanās procesiem pirmajam saspiešanas cēlienam. Šūnas, kas veidojas zigotas sasmalcināšanas rezultātā, sauc par blastomēriem. Pirmos zigotas dalījumus sauc par "sasmalcināšanu", jo šūna tiek sasmalcināta: pēc katras dalīšanās meitas šūnas kļūst arvien mazākas, un starp dalījumiem nav šūnu augšanas stadijas.
Zigotas attīstība Zigota vai nu sāk attīstīties tūlīt pēc apaugļošanās, vai arī uzliek blīvu čaulu un kādu laiku pārvēršas par atpūtas sporu (bieži saukta par zigosporu) - raksturīga daudzām sēnēm un aļģēm.
SadalīšanaDaudzšūnu dzīvnieka embrionālās attīstības periods sākas ar zigotas sadrumstalotību un beidzas ar jauna indivīda piedzimšanu. Šķelšanās process sastāv no virknes secīgu zigotas mitotisku dalījumu. Abas šūnas, kas izveidojušās jaunas zigotas dalīšanās rezultātā, un visas turpmākās šūnu paaudzes šajā posmā sauc par blastomēriem. Sasmalcināšanas laikā viens dalījums seko otram, un iegūtie blastomēri neaug, kā rezultātā katra jaunā blastomēru paaudze tiek pārstāvēta ar mazākām šūnām. Šī šūnu dalīšanās iezīme apaugļotas olšūnas attīstības laikā noteica figurāla termina parādīšanos - zigotas sasmalcināšana.
Dažādām dzīvnieku sugām olas atšķiras pēc rezervju barības vielu (dzeltenuma) daudzuma un izplatības citoplazmā. Tas lielā mērā nosaka turpmākās zigotas sadrumstalotības raksturu. Ar nelielu daudzumu un vienmērīgu dzeltenuma sadalījumu citoplazmā visa zigotas masa sadalās, veidojot identiskus blastomērus - pilnīgu vienmērīgu sasmalcināšanu (piemēram, zīdītājiem). Kad dzeltenums uzkrājas pārsvarā vienā no zigotas poliem, notiek nevienmērīga sadrumstalotība - veidojas blastomēri, kas atšķiras pēc izmēra: lielāki makromēri un mikromēri (piemēram, abiniekiem). Ja ola ir ļoti bagāta ar dzeltenumu, tad tās daļu, kurā nav dzeltenuma, sasmalcina. Tātad rāpuļiem, putniem tikai diskveida zigotas daļa vienā no poliem, kur atrodas kodols, tiek saspiesta - nepilnīga, diskveida saspiešana. Visbeidzot, kukaiņiem sasmalcināšanas procesā tiek iesaistīts tikai zigotas citoplazmas virsmas slānis - nepilnīga, virspusēja sasmalcināšana.
Sasmalcināšanas rezultātā (kad sadalošo blastomēru skaits sasniedz ievērojamu skaitu) veidojas blastula. Tipiskā gadījumā (piemēram, lancetē) blastula ir doba bumbiņa, kuras sienu veido viens šūnu slānis (blastoderma). Blastulas dobums - blastocoel, citādi saukts par primāro ķermeņa dobumu, ir piepildīts ar šķidrumu. Abiniekiem blastulai ir ļoti mazs dobums, un dažiem dzīvniekiem (piemēram, posmkājiem) blastocoel var nebūt.
gastrulācijaNākamajā embrionālā perioda posmā notiek gastrulu veidošanās process - gastrulācija. Daudziem dzīvniekiem gastrulas veidošanās notiek invaginācijas ceļā, t.i. blastodermas izvirzījumi vienā no blastulas poliem (ar intensīvu šūnu reprodukciju šajā zonā). Rezultātā veidojas divslāņu bļodveida embrijs. Šūnu ārējais slānis ir ektoderma, bet iekšējais slānis ir endoderma. Iekšējais dobums, kas rodas, kad blastulas siena izvirzās, primārā zarna, sazinās ar ārējo vidi caur atveri - primāro muti (blastoporu). Ir arī citi gastrulācijas veidi. Piemēram, dažos koelenterātos gastrulas endodermu veido imigrācija, t.i. blastodermas šūnu daļas "izlikšana" blastulas dobumā un turpmāka to atražošana. Primārā mute veidojas, pārraujot gastrulas sieniņu. Ar nevienmērīgu sasmalcināšanu (dažiem tārpiem, mīkstmiešiem) gastrula veidojas makromēru piesārņojuma rezultātā ar mikromēriem un endodermas veidošanās dēļ pirmajam. Bieži tiek kombinētas dažādas gastrulācijas metodes.
Visiem dzīvniekiem (izņemot sūkļus un koelenterātus - divslāņu dzīvniekus) gastrulācijas stadija beidzas ar cita šūnu slāņa - mezodermas - veidošanos. Šis "šūnu slānis veidojas starp ento- un ektodermu. Ir zināmi divi mezodermas ieklāšanas veidi. Annelīdos, piemēram, gastrulas blastoporu rajonā tiek izolētas divas lielas šūnas (teloblasti). Vairojoties, tās dod. paceļas līdz divām mezodermālām svītrām, no kurām (daļēji šūnu diverģences dēļ, daļēji mezodermālo sloksņu iekšienē esošo šūnu iznīcināšanas rezultātā) veidojas celomiskie maisiņi - teloblastiskā mezodermas ieklāšanas metode.Enterocelozajā. metodi (adatādaiņa, lancets, mugurkaulnieki), primārās zarnas sieniņas izvirzīšanas rezultātā veidojas sānu kabatas, kuras pēc tam atdalās un kļūst celomiskas Abos mezodermas veidošanās gadījumos aug un aizpilda primāro ķermeņa dobumu celomijas maisiņi. Ķermeņa dobuma iekšpusi klājošais šūnu mezodermālais slānis veido peritoneālo epitēliju.Dobumu, kas tādējādi aizstāja primāro, sauc par sekundāro ķermeņa dobumu jeb coelom.Teloblastiskās slēgšanas metodes gadījumā. Blastoporu mezoderma attīstās pieauguša dzīvnieka mutes atverē. Šādus organismus sauc par protostomiem. Deuterostomās (ar enterocelozo mezodermas ieklāšanas metodi) blastopora aizaug vai pārvēršas par tūpļa atveri, un pieauguša cilvēka mute rodas otro reizi, izvirzoties ektodermai.
Trīs dīgļu slāņu (ekto-, ento- un mezodermas) veidošanās pabeidz gastrulācijas stadiju, un no šī brīža sākas histo- un organoģenēzes procesi. Trīs dīgļu slāņu šūnu diferenciācijas rezultātā veidojas dažādi jaunattīstības organisma audi un orgāni. Jau pagājušā gadsimta beigās (lielā mērā pateicoties I. I. Mečņikova un A. O. Kovaļevska pētījumiem) tika konstatēts, ka dažādām dzīvnieku sugām no vieniem un tiem pašiem dīgļu slāņiem veidojas vienādi orgāni un audi. No ektodermas veidojas epiderma ar visām atvasinātajām struktūrām un nervu sistēma. Endodermas dēļ veidojas gremošanas trakts un ar to saistītie orgāni (aknas, aizkuņģa dziedzeris, plaušas utt.). Mezoderma veido skeletu, asinsvadu sistēmu, izvadaparātu, dzimumdziedzerus. Lai gan mūsdienās dīgļu slāņi netiek uzskatīti par stingri specializētiem, tomēr to homoloģija lielākajā daļā dzīvnieku sugu ir acīmredzama, kas liecina par dzīvnieku valsts izcelsmes vienotību.
Embrionālajā periodā attīstās organismu augšanas un diferenciācijas ātrums. Ja drupināšanas procesā augšana nenotiek un blastula (pēc savas masas) var būt ievērojami zemāka par zigotu, tad, sākot no gastrulācijas procesa, embrija masa strauji palielinās (intensīvas šūnu reprodukcijas dēļ). Šūnu diferenciācijas procesi sākas agrīnākajā embrioģenēzes stadijā - sasmalcina un ir pamatā primārajai audu diferenciācijai - trīs dīgļu slāņu (embrionālo audu) rašanās. Tālāku embrija attīstību pavada arvien pieaugošs audu un orgānu diferenciācijas process. Embrionālā attīstības perioda rezultātā veidojas organisms, kas spēj patstāvīgi (vairāk vai mazāk) eksistēt ārējā vidē. Jauns indivīds piedzimst vai nu pēc olšūnas izšķilšanās (olšūniem dzīvniekiem) vai izejot no mātes ķermeņa (dzīvdzemdību periodā).
Histo - un organoģenēzeEmbrija histo un organoģenēze tiek veikta reprodukcijas, migrācijas, šūnu, tās sastāvdaļu diferenciācijas, starpšūnu kontaktu nodibināšanas un dažu šūnu nāves rezultātā. No 317. līdz 20. dienai turpinās presomītiskais periods no 20. dienas sākas somītu attīstības periods. 20. embrioģenēzes dienā, veidojoties stumbra krokām (cefalokaudālām un laterālām), pats embrijs tiek atdalīts no ārpusembrionālajiem orgāniem, kā arī tā plakanā forma tiek mainīta uz cilindrisku. Tajā pašā laikā embrija mezodermas muguras daļas tiek sadalītas atsevišķos segmentos, kas atrodas abās horda pusēs - somītēs. 21. dienā embrija ķermenī ir 2-3 somītu pāri. Somīti sāk veidoties no III pāra, I un II pāri parādās nedaudz vēlāk. Somītu skaits pakāpeniski palielinās: 23. attīstības dienā ir 10 somītu pāri, 25. - 14 pāri, 27. - 25 pāri, piektās nedēļas beigās somītu skaits embrijā sasniedz 43. -44 pāri. Pamatojoties uz somītu skaita aprēķinu, ir iespējams aptuveni noteikt embrija attīstības laiku (somītisko vecumu).
No katra somīta ārējās daļas rodas dermatoms, no iekšējās - sklerots, no vidus - miots. Dermatoms kļūst par ādas dermas avotu, sklerots kļūst par skrimšļa un kaulu audu avotu, un miotoms kļūst par embrija muguras daļas skeleta muskuļu avotu. Mezodermas ventrālās daļas - splanhnotoms - nav segmentētas, bet sadalītas viscerālās un parietālās loksnēs, no kurām attīstās iekšējo orgānu serozās membrānas, sirds muskuļu audi un virsnieru garoza. No splanhnotoma mezenhīma veidojas embrija asinsvadi, asins šūnas, saistaudu un gludo muskuļu audi. Mezodermas daļa, kas savieno somītus ar splanhnotomu, ir sadalīta segmentētās kājās - nefrogonotā, kas kalpo kā avots nieru un dzimumdziedzeru, kā arī paramezonefrisko kanālu attīstībai. No pēdējām veidojas dzemdes un olšūnas epitēlijs.
Dīgļu ektodermas diferenciācijas procesā veidojas nervu caurule, nervu cekuls, plakodes, ādas ektoderma un prehordālā plāksne. Neironu caurules veidošanās procesu sauc par neirulāciju. Tas sastāv no spraugai līdzīgas ieplakas veidošanās uz ektodermas virsmas; šīs ieplakas sabiezinātās malas (neironu krokas) saplūst, veidojot nervu caurulīti. Smadzeņu pūslīši veidojas no nervu caurules galvaskausa daļas, kas ir smadzeņu pamats. Abās nervu caurules pusēs (starp pēdējo un ādas ektodermu) tiek atdalītas šūnu grupas, no kurām veidojas nervu cekulas. Neironu ceku šūnas spēj migrēt. Šūnās, kas migrē dermatomas virzienā, veidojas pigmenta šūnas - melanocīti; nervu ceku šūnas, kas migrē uz vēdera dobumu, rada simpātiskus un parasimpātiskus ganglijus, virsnieru medulla. No nervu cekulu šūnām, kuras nemigrēja, veidojas ganglioniskās plāksnes, no kurām attīstās mugurkaula un perifērie autonomie nervu gangliji. No plakkodiem veidojas galvas gangliji un dzirdes un līdzsvara orgāna nervu šūnas.
Antropoloģija un bioloģijas jēdzieni Kurčanovs Nikolajs Anatoļjevičs
Zigota un šķelšanās stadijas
Zigota, kas veidojas gametu saplūšanas rezultātā, ir daudzšūnu organisma attīstības vienšūnu stadija. Lai gan šī posma ilgums parasti ir īss, ir iespējams izsekot tajā notiekošajām citomorfoloģiskajām un bioķīmiskajām izmaiņām. Šīm izmaiņām ir svarīga loma turpmākajos embrioģenēzes procesos. Vairākiem dzīvniekiem jau zigotā proteīnu sintēze sākas no mRNS, kas veidojas ooģenēzes laikā.
Sadalīšana ir secīgu mitotisku dalījumu process, kas bieži vien ir nevienmērīgs. Šūnas, kas veidojas šķelšanās laikā, sauc blastomēri. Sasmalcināšana beidzas ar veidošanu blastula, parasti ar iekšēju dobumu - blastocoel. Sasmalcināšanas perioda raksturīga iezīme ir augšanas trūkums. Lai gan embrijs blastulas stadijā var sastāvēt no simtiem šūnu, tā izmērs nepārsniedz zigotas izmēru.
Atkarībā no olu veida ir vairāki drupināšanas un blastula veidi. Ir divi galvenie olu veidi.
Homolecitālās olas - ir kodols, kas atrodas centrā, un dzeltenums vienmērīgi sadalīts citoplazmā.
Telolecitālās olas - tiem ir izteikta polaritāte, ekscentrisks kodola izvietojums un nevienmērīgi sadalīts dzeltenums citoplazmā.
Homolecitālās olas parasti rada blastulas ar identiskiem blastomēriem: coeloblastula(ar dobumu) vai morulu(bez dobuma). Telolecitālās olas rada blastulas ar nevienlīdzīgiem blastomēriem: amfiblastula(pilnīga sasmalcināšana) vai diskoblastula(daļēja saspiešana). Zīdītājiem sasmalcināšanas rezultātā veidojas morula, bet pēc tam pilnīgas blastomēru asinhronās sadalīšanās laikā notiek papildu stadija - dīgļu pūslīši, vai blastocista.
Šis teksts ir ievaddaļa. No grāmatas Bioloģija [Pilnīgs ceļvedis, lai sagatavotos eksāmenam] autors Lerners Georgijs Isaakovičs No grāmatas Psihofizioloģijas pamati autors Aleksandrovs Jurijs No grāmatas Adekvāta uztura un trofoloģijas teorija [tabulas tekstā] autors1.2. Atmiņas fiksācijas posmi Hipotēze par divām secīgi attīstošām pēdām. Saskaņā ar hipotēzi engrammas veidošanās notiek divos posmos: pirmajam ir raksturīga nestabila pēdas forma un tā pastāv īsu laiku. Šis ir posms
No grāmatas Adekvāta uztura un trofoloģijas teorija [tabulas ar attēliem] autors Ugoļevs Aleksandrs Mihailovičs3. NREM MIEGA UN REM MIEGA POSMI Galvenie dati, kas iegūti daudzu un daudzveidīgu miega pētījumu gadu laikā, ir šādi. Miegs nav pārtraukums smadzeņu darbībā, tas ir tikai atšķirīgs stāvoklis. Miega laikā smadzenes iziet vairākas dažādas fāzes,
No grāmatas Antropoloģija un bioloģijas jēdzieni autors Kurčanovs Nikolajs Anatoļjevičs No autora grāmatas9.2. Dzīvības izcelsme un agrīnās attīstības stadijas Mūsdienu dzīvības rašanās teorija ir teorija par tādu struktūru izskatu, kuras, attīstoties un kļūstot sarežģītākas, ieguva noteiktas funkcionālās īpašības. Acīmredzot šīs īpašības varēja rasties jau agrīnā stadijā.
No autora grāmatasFotosintēzes stadijas Fotosintēzes procesā izšķir divus posmus - gaišo un tumšo.Fotosintēzes gaismas fāzē Saules enerģiju izmanto ATP un augstas enerģijas elektronu nesēju sintezēšanai. Gaismas enerģija, ko absorbē jebkura molekula